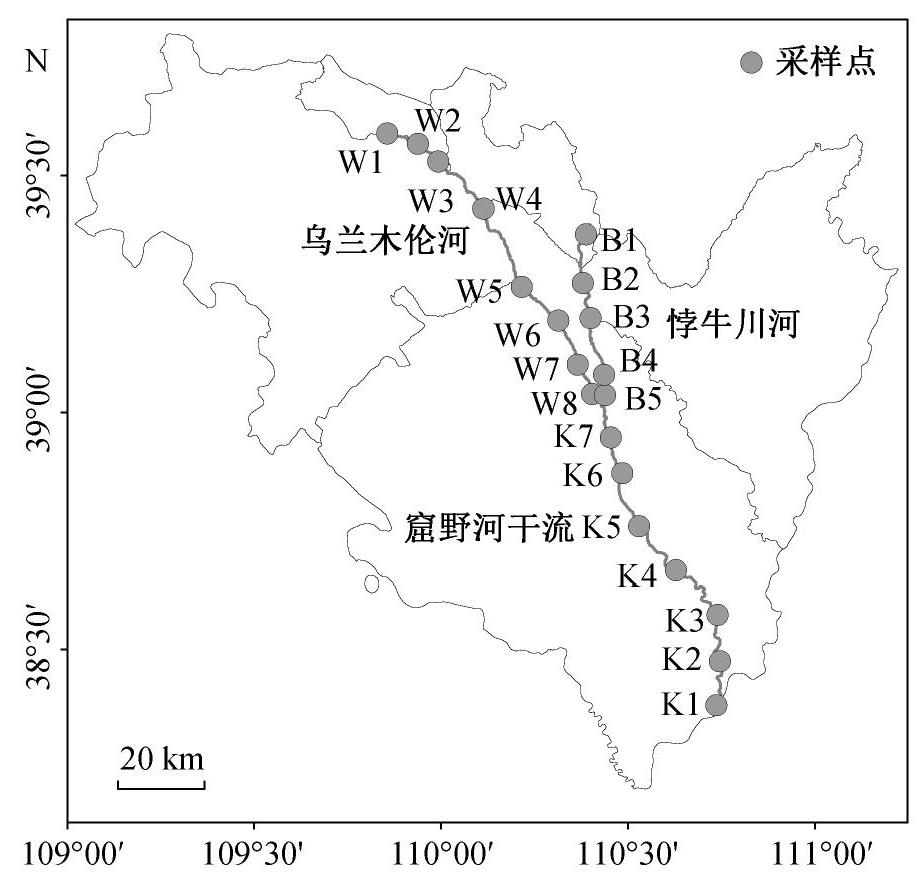
图1 窟野河流域采样点位置
Fig.1 Location of sample sites in the Kuye River basin
北京大学学报(自然科学版) 第62 卷 第4 期 2026 年7 月
Acta Scientiarum Naturalium Universitatis Pekinensis, Vol. 62, No. 4 (July 2026)
doi: 10.13209/j.0479-8023.2026.045
国家自然科学基金(52209078, U2243201)、西安市青年人才托举计划(0959202513029)和中央高校基本科研业务费专项资金(xtr052025034)资助
收稿日期: 2025-04-23;
修回日期: 2025-05-23
Distribution Characteristics and Driving Factors of Phytoplankton Community in the Kuye River Basin
河流是众多水生生物的栖息地, 提供饮用水、灌溉用水和工业用水等重要水资源[1]。随着社会经济的快速发展, 河流受到的人类活动扰动日益增加,导致水质下降, 水生生态系统严重退化, 进而干扰人类生产和生活[2]。此外, 旱区河流通常水资源稀缺且时空分布不均, 对环境变化的抵抗力低, 因此旱区河流面临人为和自然的双重压力, 生态系统更脆弱[3]。
浮游植物是河流生态系统的重要生产者, 在河流生态系统的物质转化、能量流动及维持河流生态系统稳定方面发挥重要作用[4]。浮游植物还扮演着关键的生态健康指示者角色, 其群落结构及物种组成是反映水环境状况的良好指标。浮游植物对水环境变化敏感, 其生长状况受多种因素影响, 包括水温[5]、pH 值[6]和营养盐[7]等。不同的浮游植物表现出对不同理化条件的偏好性。例如, 蓝藻能在 40℃下生长, 硅藻在水温只有 10℃ 时也能正常生长[8];栅藻可以在高光强环境下生长, 小球藻则适合在低光照下生存[9]; 铜绿微囊藻最适生长pH 值为 10.83,小球藻则是 7.73[10]。因此, 深入探究浮游植物群落的动态及其环境驱动力, 对评估河流的生态健康状况和保护生物多样性具有重要意义。
窟野河是黄河中游右岸一级支流, 流域以黄土高原侵蚀地貌为主, 是中国北方典型旱区河流[11]。流域内自然环境恶劣, 人类活动强度较高, 且径流量时空分布不均[12]。此外, 流域内植被稀疏, 水土流失问题严重, 导致河流含沙量较高[13]。浮游植物是水生生态系统初级生产者的核心组成部分, 其群落时空动态变化能够敏锐地反映河流环境状况, 是评估水生态系统健康的关键指标。在全球气候变化加剧与人类活动强度持续提升的双重胁迫下, 窟野河水生态系统正遭受前所未有的生态压力。
本研究聚焦于窟野河流域, 旨在系统地阐明该流域浮游植物群落的结构特征, 精准地识别驱动其变化的关键环境因子, 并深入地揭示浮游植物群落对环境变化的生态响应机制。因此, 选取窟野河的3 个主要河段, 包括上游河段(乌兰木伦河)、主要支流(悖牛川河)和下游河段(窟野河干流)为研究对象, 探究窟野河流域浮游植物的组成及其影响因素,以期为窟野河流域水生态保护和可持续发展提供科学依据。
窟野河流域地理坐标为 38°22'26′′—39°51'18′′N,109°25'56′′—110°48'49′′E, 流域面积为 8706 km2,河流总长 242 km。窟野河源自鄂尔多斯沙漠地区的乌兰木伦河, 悖牛川河作为其最大的支流, 在陕西省神木县城以北的房子塔处与之汇合, 汇合点以下河段称为窟野河干流。为了对窟野河流域的水质及浮游植物群落进行综合评估, 我们于 2023 年 5 月开展浮游植物和水体理化指标的调查。根据《水生生物调查技术规范》(DB11 T1721—2020)和现场可涉水条件, 在流域内布置 20 个监测点。其中, 窟野河干流布设 7 个监测站点(K1~K7)、乌兰木伦河布设 8个监测站点(W1~W8), 悖牛川河布设 5 个监测站点(B1~B5)。采样点位置见图1。
图1 窟野河流域采样点位置
Fig.1 Location of sample sites in the Kuye River basin
在每个采样点, 使用 1 L 聚乙烯瓶收集 3 个平行水样, 现场加入 15 mL 鲁哥氏液进行固定。沉降 48小时后, 用细橡胶管缓慢吸取上清液, 留下 30 mL沉降后的浓缩浮游植物水样, 并转移到 50 mL 样品瓶中, 加入 1~2 mL 40%的甲醛进行长期保存[14]。
取 0.1 mL 摇匀后的样品, 置于蔡司成像 A2 荧光显微镜(Zeiss, Oberkochen, 德国)下进行镜检, 采用全片计数法计算细胞密度。生物量的测定采用体积转化法, 细胞的平均体积根据物种的几何形状计算[15]。浮游植物物种鉴定参照《中国淡水藻类-系统、分类及生态》[16]和《中国常见淡水浮游藻类图谱》[17]。
运用 Shannon-Wiener 多样性指数(H' )[18]和 Pielou 均匀度指数(J) [19]评估浮游植物群落多样性。通过计算浮游植物优势度指数(Y), 评价河流浮游植物优势种, 将 Y≥0.02 的浮游藻类确定为优势种[20]。计算公式如下:
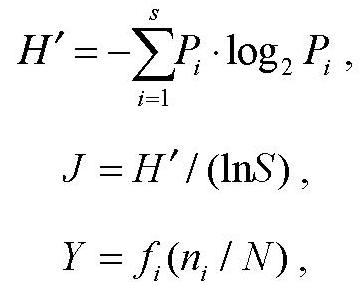
式中, S 为样品中所有浮游植物的种类数, Pi 为第 i 种占总个体数的百分比, fi 为第 i 个物种的出现频率, ni为第 i 种浮游植物的个数, N为同一样品中所有物种的总个数。
在现场使用多参数水质分析仪(HK-258, 北京华科仪科技有限公司, 中国)对水体进行实地原位检测, 测量 pH、水温(WT)、溶解氧(DO)、电导率(COND)和总溶解性固体(TDS)等指标, 根据《水和废水检测分析方法》(第四版) [21]测定总磷(TP)、总氮(TN)、氨氮(NH4+-N)和硝态氮(NO3--N)浓度, 参照《湖泊富营养化调查规范》(第二版) [22]测定叶绿素 a (Chl a)浓度。
采用水质质量指数(WQI)对水质进行评价, 该方法根据污染因子及其权重进行计算, 污染因子的选取和权重大小参照文献[23-24]。根据 WQI 值,将水质分为 5 个等级: 优秀(91~100)、良好(71~90)、中等(51~70)、差(26~50)和极差(0~25)。WQI指数的计算公式为
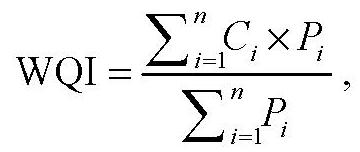
式中, Ci 为第 i 种水质因子的标准化得分, n 为水质因子个数, Pi 为第 i 种水质因子的权重。水质因子及其权重如表1 所示。
表1 WQI 方法中各水质因子分数及权重
Table1 WQI water quality parameters and their weights
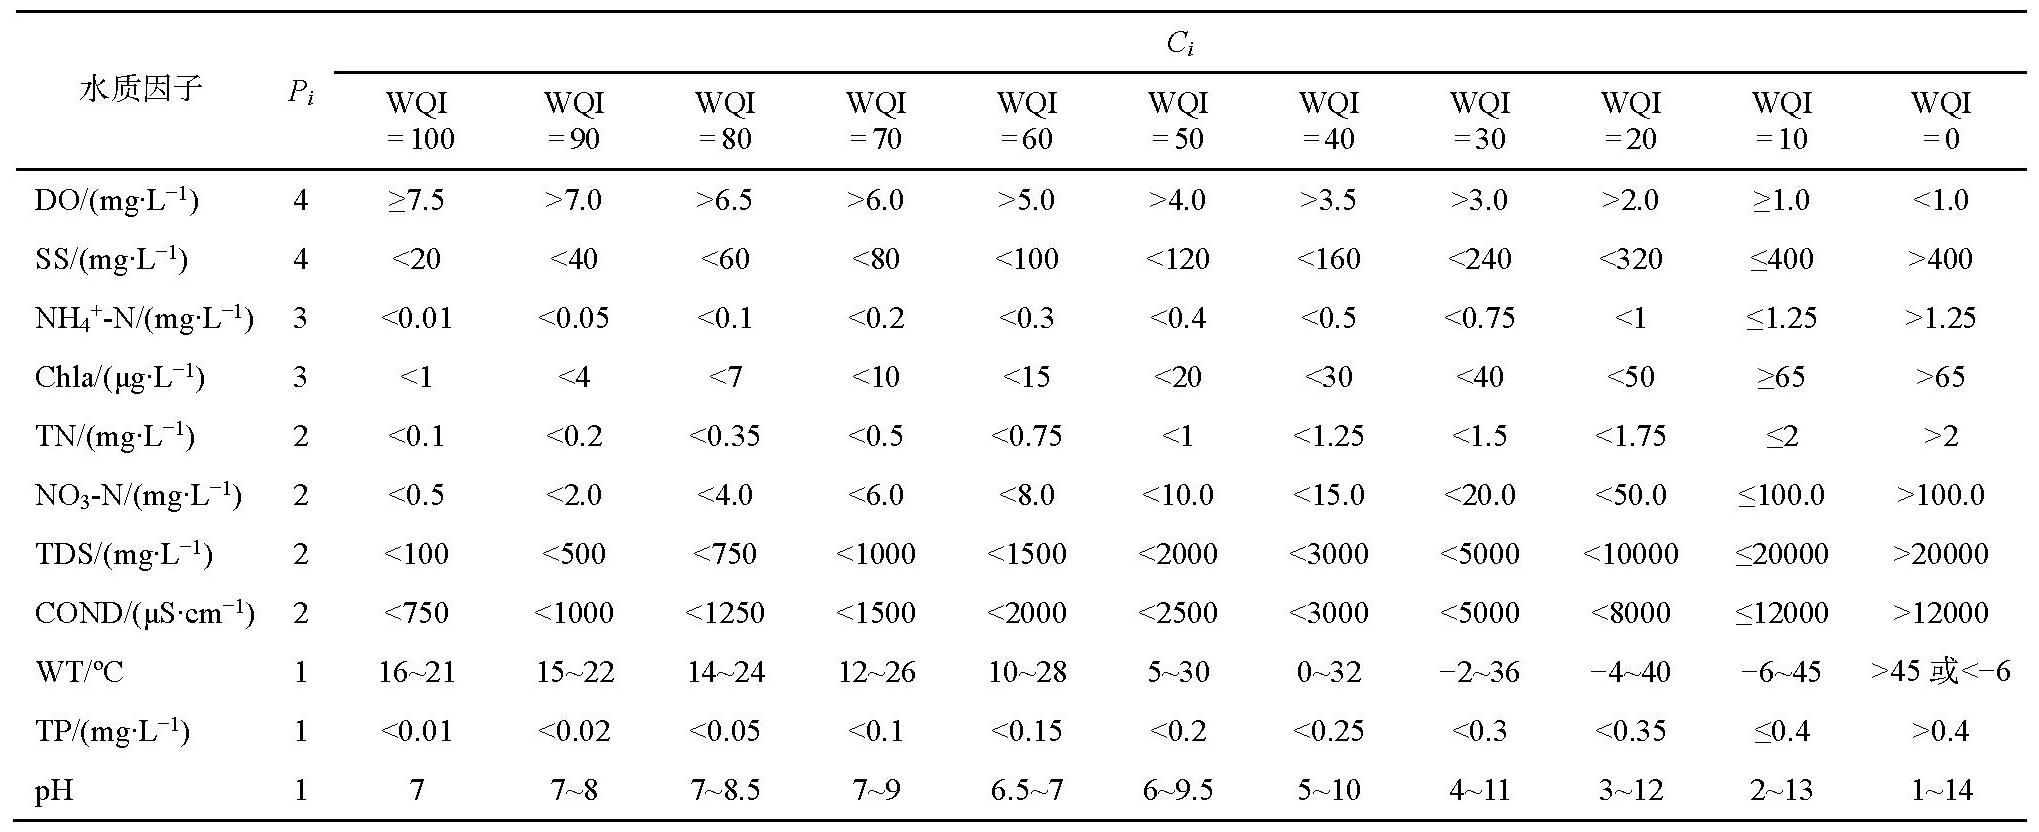
Ci 水质因子 Pi = 100 WQI WQI = 90 WQI = 80 WQI = 70 WQI = 60 WQI = 50 WQI = 40 WQI = 30 WQI = 20 WQI = 10 WQI = 0 DO/(mg·L-1) 4 ≥7.5 >7.0 >6.5 >6.0 >5.0 >4.0 >3.5 >3.0 >2.0 ≥1.0 <1.0 SS/(mg·L-1) 4 <20 <40 <60 <80 <100 <120 <160 <240 <320 ≤400 >400 NH4+-N/(mg·L-1) 3 <0.01 <0.05 <0.1 <0.2 <0.3 <0.4 <0.5 <0.75 <1 ≤1.25 >1.25 Chla/(μg·L-1) 3 <1 <4 <7 <10 <15 <20 <30 <40 <50 ≥65 >65 TN/(mg·L-1) 2 <0.1 <0.2 <0.35 <0.5 <0.75 <1 <1.25 <1.5 <1.75 ≤2 >2 NO3-N/(mg·L-1) 2 <0.5 <2.0 <4.0 <6.0 <8.0 <10.0 <15.0 <20.0 <50.0 ≤100.0 >100.0 TDS/(mg·L-1) 2 <100 <500 <750 <1000 <1500 <2000 <3000 <5000 <10000 ≤20000>20000 COND/(μS·cm-1) 2 <750 <1000 <1250 <1500 <2000 <2500 <3000 <5000 <8000 ≤12000>12000 WT/°C 1 16~21 15~22 14~24 12~26 10~28 5~30 0~32 -2~36 -4~40 -6~45 >45或<-6 TP/(mg·L-1) 1 <0.01 <0.02 <0.05 <0.1 <0.15 <0.2 <0.25 <0.3 <0.35 ≤0.4 >0.4 pH 1 7 7~8 7~8.5 7~9 6.5~7 6~9.5 5~10 4~11 3~12 2~13 1~14
本研究使用 ArcGIS Pro (v3.0.1)软件绘制采样点及水质评价结果的地图, 其他统计分析均采用 R (v4.4.1)进行。基于 ggpubr 软件包, 执行 Kruskal-Wallis (K-W test)非参数检验, 评估不同河段间水环境因子的整体差异, 并执行 Wilcoxon 秩和检验, 对各河段进行两两比较。基于 Bray-Curtis 相似性矩阵, 运用非度量多维尺度(NMDS)分析, 检验不同河段间浮游植物群落结构的差异, 并采用 ANOSIM 方法评估不同河段间浮游植物群落结构差异的显著性。利用 vegan 包进行冗余分析(RDA), 分析前对所有环境因子进行去共线性处理(VIF<10), 通过方差分析来检验模型整体的显著性, 并采用 999 次排列的蒙特卡洛检验评估各解释变量的显著性[25]。使用 pheatmap 包绘制 Spearman 相关性热图, 其中相关性系数通过 psych 包计算。
图2 展示窟野河流域的水体理化指标监测结果。总体而言, 水体环境中的 WT, DOC, pH, NH4+-N 和 NO3--N在不同河段之间存在显著差异(K-W test p < 0.05)。从 WT 和 DOC 平均值来看, 上游的乌兰木伦河最高(17.76℃ 和 18.21 mg/L), 窟野河干流次之(17.51℃和 14.67 mg/L), 悖牛川最低(14.40℃和14.20 mg/L)。窟野河流域呈现弱碱性状态, pH 值在窟野河干流最高(8.41), 乌兰木伦河次之(8.26), 悖牛川河最低(8.21)。NH4+-N 浓度在悖牛川河(0.05 mg/L)高于窟野河干流(0.020 mg/L)和乌兰木伦河(0.023 mg/L), NO3--N 浓度在窟野河干流最高(1.80 mg/L), 乌兰木伦河次之(1.37 mg/L), 悖牛川最低(0.77 mg/L)。
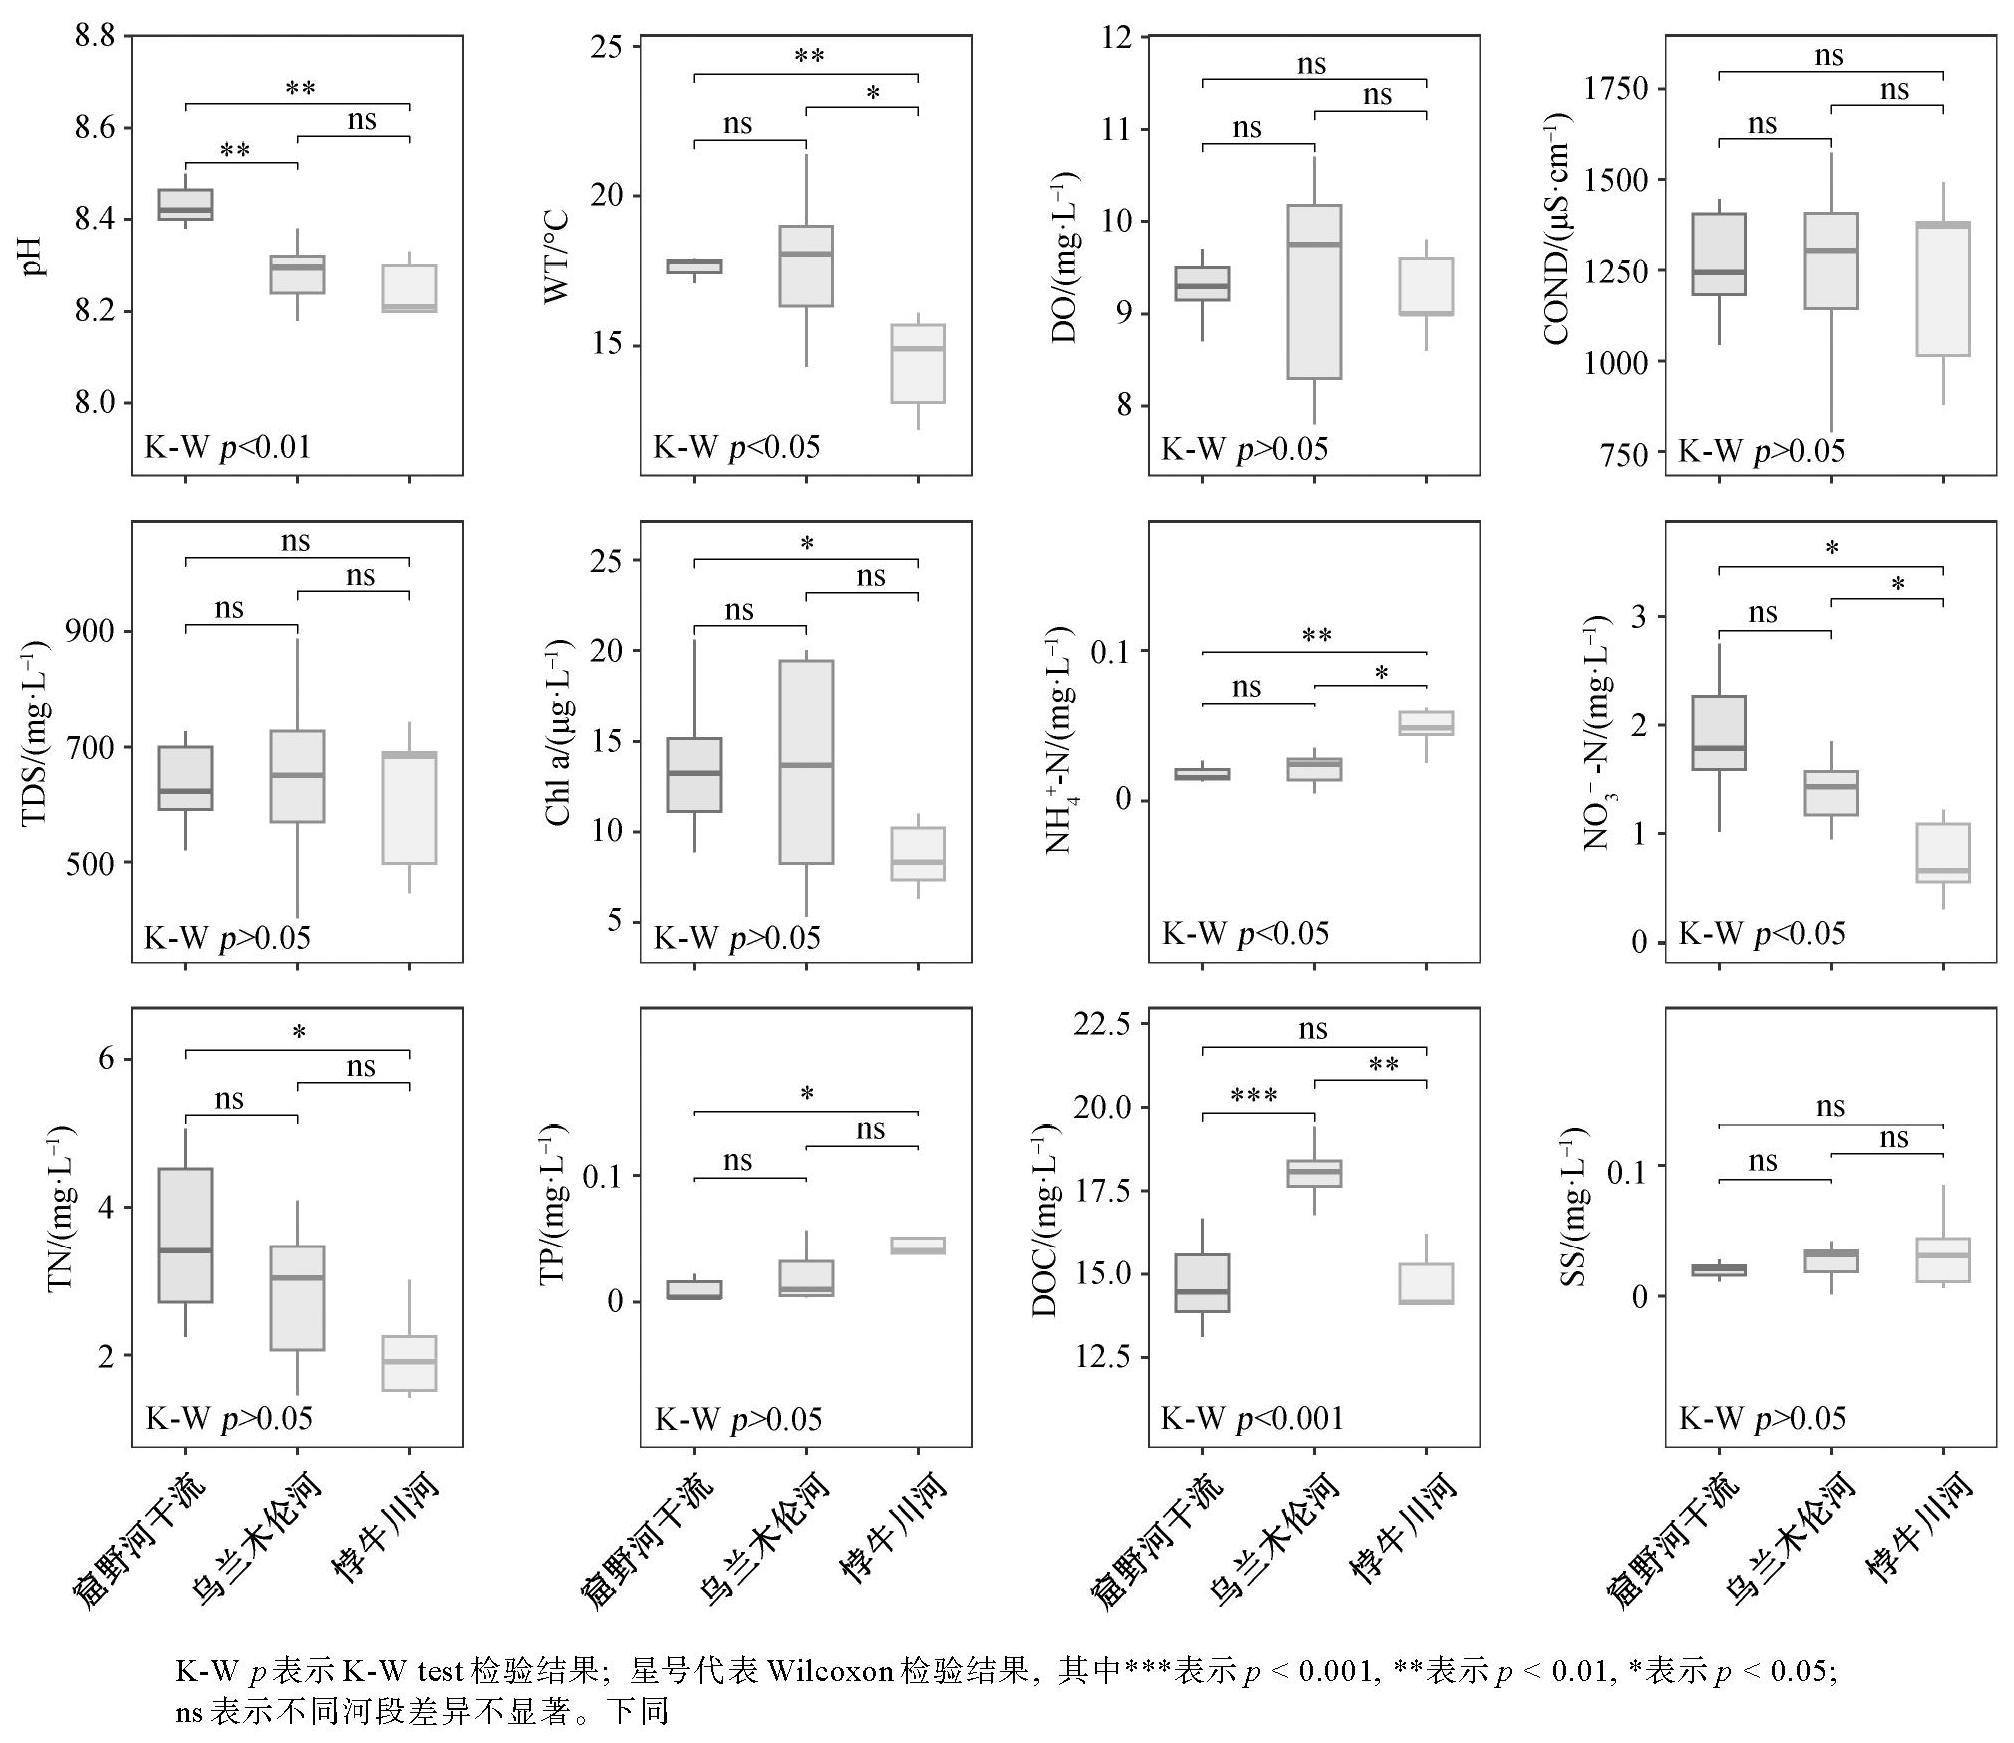
图2 窟野河流域水体理化参数的差异
Fig.2 Differences of physicochemical parameters of water samples in the Kuye River basin
在窟野河流域共鉴定出浮游植物 6 门 41 属 60种。其中, 绿藻门种类最多, 共有 16 属 27 种, 占总物种数的 45%; 硅藻门紧随其后, 有 18 属 26 种, 占总物种数的 43.33%; 蓝藻门有 4 属 4 种, 占 6.67%; 隐藻门、金藻门和甲藻门的种类较少, 各只有 1属 1 种, 占总物种数的 0.5%。此外, 乌兰木伦河的浮游植物种类(49 种)多于窟野河干流(41 种)和悖牛川河(27 种)。
窟野河流域浮游植物细胞密度和生物量的空间分布如图3 所示。窟野河干流、乌兰木伦河和悖牛川河的浮游植物平均细胞密度分别为 3.78×10⁶ ± 0.33×10⁶, 3.52×10⁶ ± 3.12×10⁶ 和 0.22×10⁶ ± 0.32×10⁶ cells/L。窟野河干流、乌兰木伦河和悖牛川河的浮游植物平均生物量分别为 1.91 ± 0.93, 1.14 ± 0.86 和0.15 ± 0.16 mg/L。窟野河干流的浮游植物平均细胞密度和平均生物量最大, 悖牛川河最小, 浮游植物细胞密度与生物量变化基本上一致。在门水平上, 细胞密度方面, 窟野河干流以硅藻(1.96 mg/L)和绿藻(1.56 mg/L)主导, 乌兰木伦河(2.21 mg/L)和悖牛川河(0.17 mg/L)主要由绿藻组成; 在生物量方面, 硅藻在所有河段均占据主导地位(相对丰度>80%)。在属水平, 小环藻属和栅藻在窟野河干流(1.44 mg/L,0.74 mg/L)和乌兰木伦河(0.42 mg/L, 1.21 mg/L)的细胞密度较大, 而悖牛川河主要由颤藻(0.03 mg/L)主导; 在生物量方面, 小环藻和舟形藻在窟野河干流和乌兰木伦河中占据优势, 而舟形藻在悖牛川河生物量较大。悖牛川河总生物量偏小, 可能与流速较快、浊度大等水力条件有关[26]。此外, 窟野河流域浮游植物的生物量与 TN 显著正相关(p < 0.01 , r =0.58), 与汉江的研究结果[15]类似, 即水体营养状况(尤其 TN)可能显著地影响浮游植物的生物量。
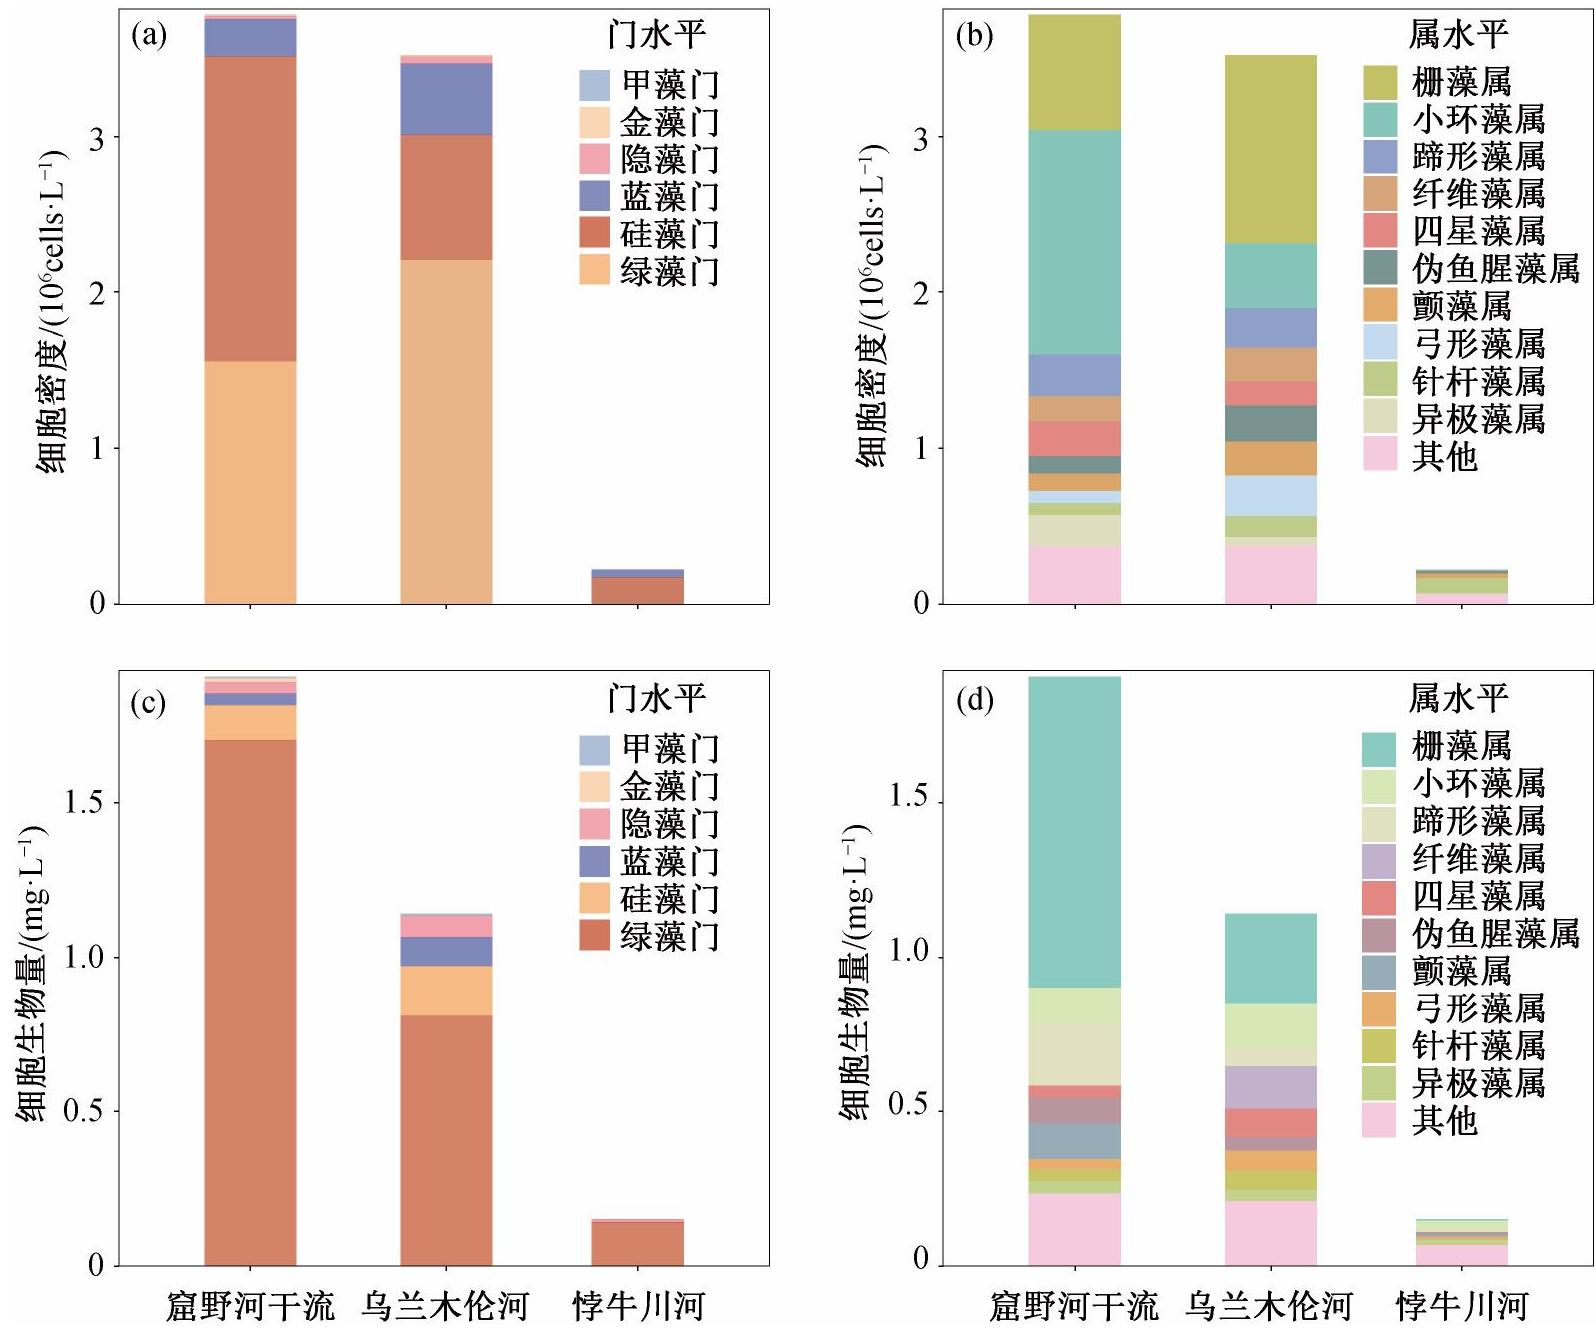
图3 窟野河流域浮游植物门水平和属水平的密度和生物量
Fig.3 Density and biomass of phytoplankton at phylum and genus levels in the Kuye River basin
相比于其他旱区河流[27-28], 窟野河的浮游植物多样性指数较低, 表明其群落结构相对简单。窟野河流域的浮游植物组成以及多样性在各河段差异显著。绿藻和硅藻在干流及乌兰木伦河中为主要优势种, 其密度和生物量贡献均超过 80%, 与国内其他内源河流的研究结果[29]一致。干流中, 栅藻占优。栅藻是常见的淡水绿藻, 易在富营养静水水体中繁殖[30]。悖牛川河中, 等片藻占据优势, 它喜好在流水环境中浮游生活[31]。蓝藻门的伪鱼腥藻在 3 条河段均有分布, 它适应性强, 窟野河的低温微碱性条件更利于其生长[32]。
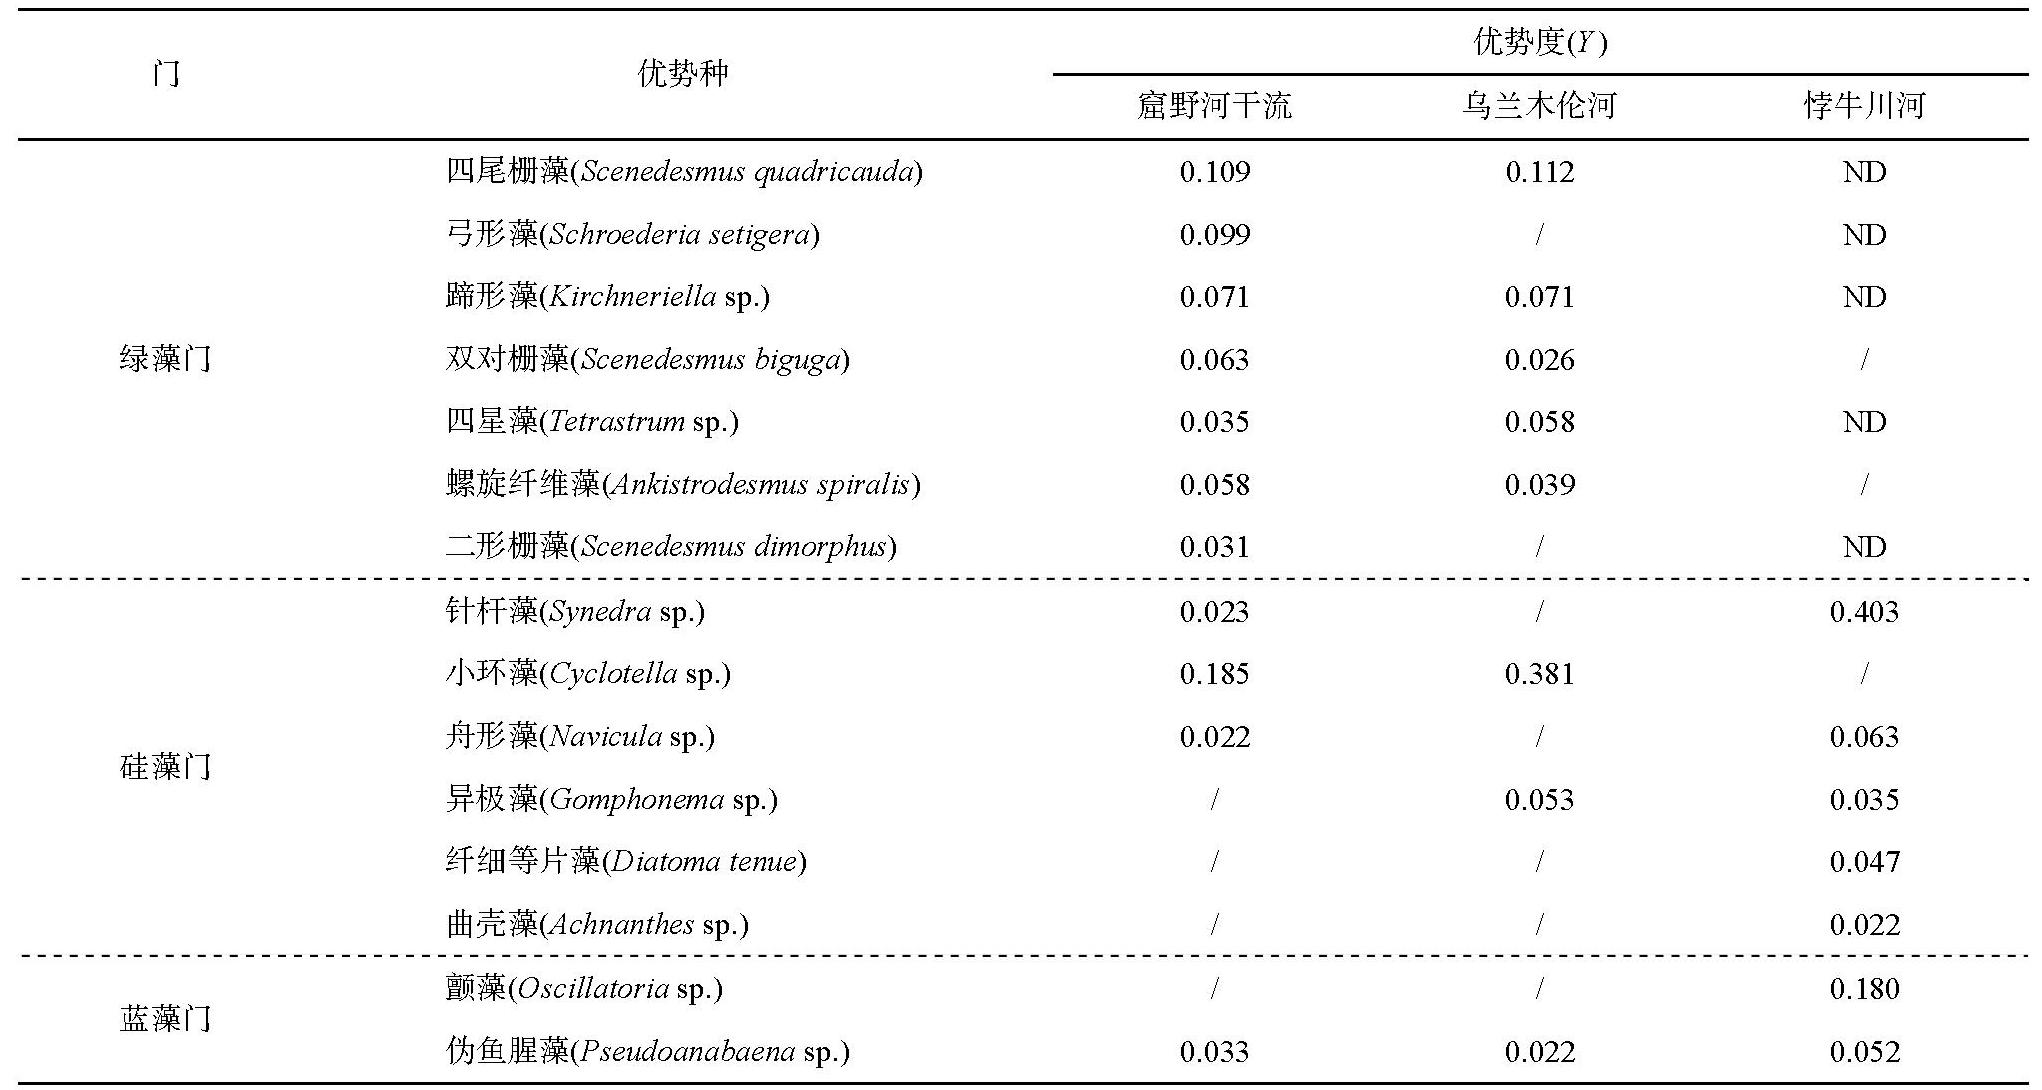
优势种和优势度(Y )是评价浮游植物群落结构的重要指标。如表2 所示, 窟野河干流在这些河流中拥有最多的优势物种, 共计 9 属 11 种, 其中硅藻门的小环藻(Cyclotella sp., Y = 0.185.)、绿藻门的四尾栅藻(Scenedesmus quadricauda, Y = 0.109)和弓形藻(Schroederia setigera, Y= 0.099)是主要优势种。相比之下, 乌兰木伦河和悖牛川河的优势物种数量较为接近, 分别有 7 属 8 种和 7 属 7 种。乌兰木伦河的优势种主要为硅藻门的小环藻(Cyclotella sp., Y = 0.381), 绿藻门的四尾栅藻(Scenedesmus quadricauda, Y = 0.112)和蹄形藻(Kirchneriella sp., Y = 0.071), 悖牛川河的优势种则主要是硅藻门的针杆藻(Synedra sp., Y= 0.403)和蓝藻门的颤藻(Oscillatoria sp., Y= 0.180)。尽管乌兰木伦河物种数较多, 但窟野河干流拥有更多优势物种且优势度较低, 表明其浮游植物群落更为稳定[26]。
表2 窟野河流域浮游植物不同门类优势种
Table2 Dominant species of phytoplankton of different phyla in the Kuye River basin
门 优势种优势度(Y)窟野河干流 乌兰木伦河 悖牛川河四尾栅藻(Scenedesmus quadricauda) 0.109 0.112 ND 弓形藻(Schroederia setigera) 0.099 / ND 蹄形藻(Kirchneriella sp.) 0.071 0.071 ND 绿藻门 双对栅藻(Scenedesmus biguga) 0.063 0.026 /四星藻(Tetrastrum sp.) 0.035 0.058 ND 螺旋纤维藻(Ankistrodesmus spiralis) 0.058 0.039 /二形栅藻(Scenedesmus dimorphus) 0.031 / ND 针杆藻(Synedra sp.) 0.023 / 0.403 小环藻(Cyclotella sp.) 0.185 0.381 /舟形藻(Navicula sp.) 0.022 / 0.063 硅藻门异极藻(Gomphonema sp.) / 0.053 0.035 纤细等片藻(Diatoma tenue) / / 0.047 曲壳藻(Achnanthes sp.) / / 0.022 蓝藻门颤藻(Oscillatoria sp.) / / 0.180 伪鱼腥藻(Pseudoanabaena sp.) 0.033 0.022 0.052
说明: “/”表示此物种优势度Y<0.02, “ND”表示此物种未检出。
图4(a)和(b)显示, 窟野河流域 3 条河段的 Shannon-Wiener多样性指数存在显著差异(p < 0.01)。乌兰木伦河的 Shannon-Wiener 多样性指数(2.51)和Pielou 均匀度指数(0.80)平均值均最高, 窟野河干流的 Shannon-Wiener 多样性指数(2.23)和 Pielou 均匀度指数(0.73)居中, 悖牛川则表现出最低的平均值(1.66 和 0.63)。NMDS 分析进一步揭示窟野河流域浮游植物群落在 3 条河段间具有显著差异(图4(c)),ANOSIM 分析结果(图4(d))进一步证实, 不同河段间浮游植物群落组成具有统计学差异(R2 = 0.682, p =0.001)。
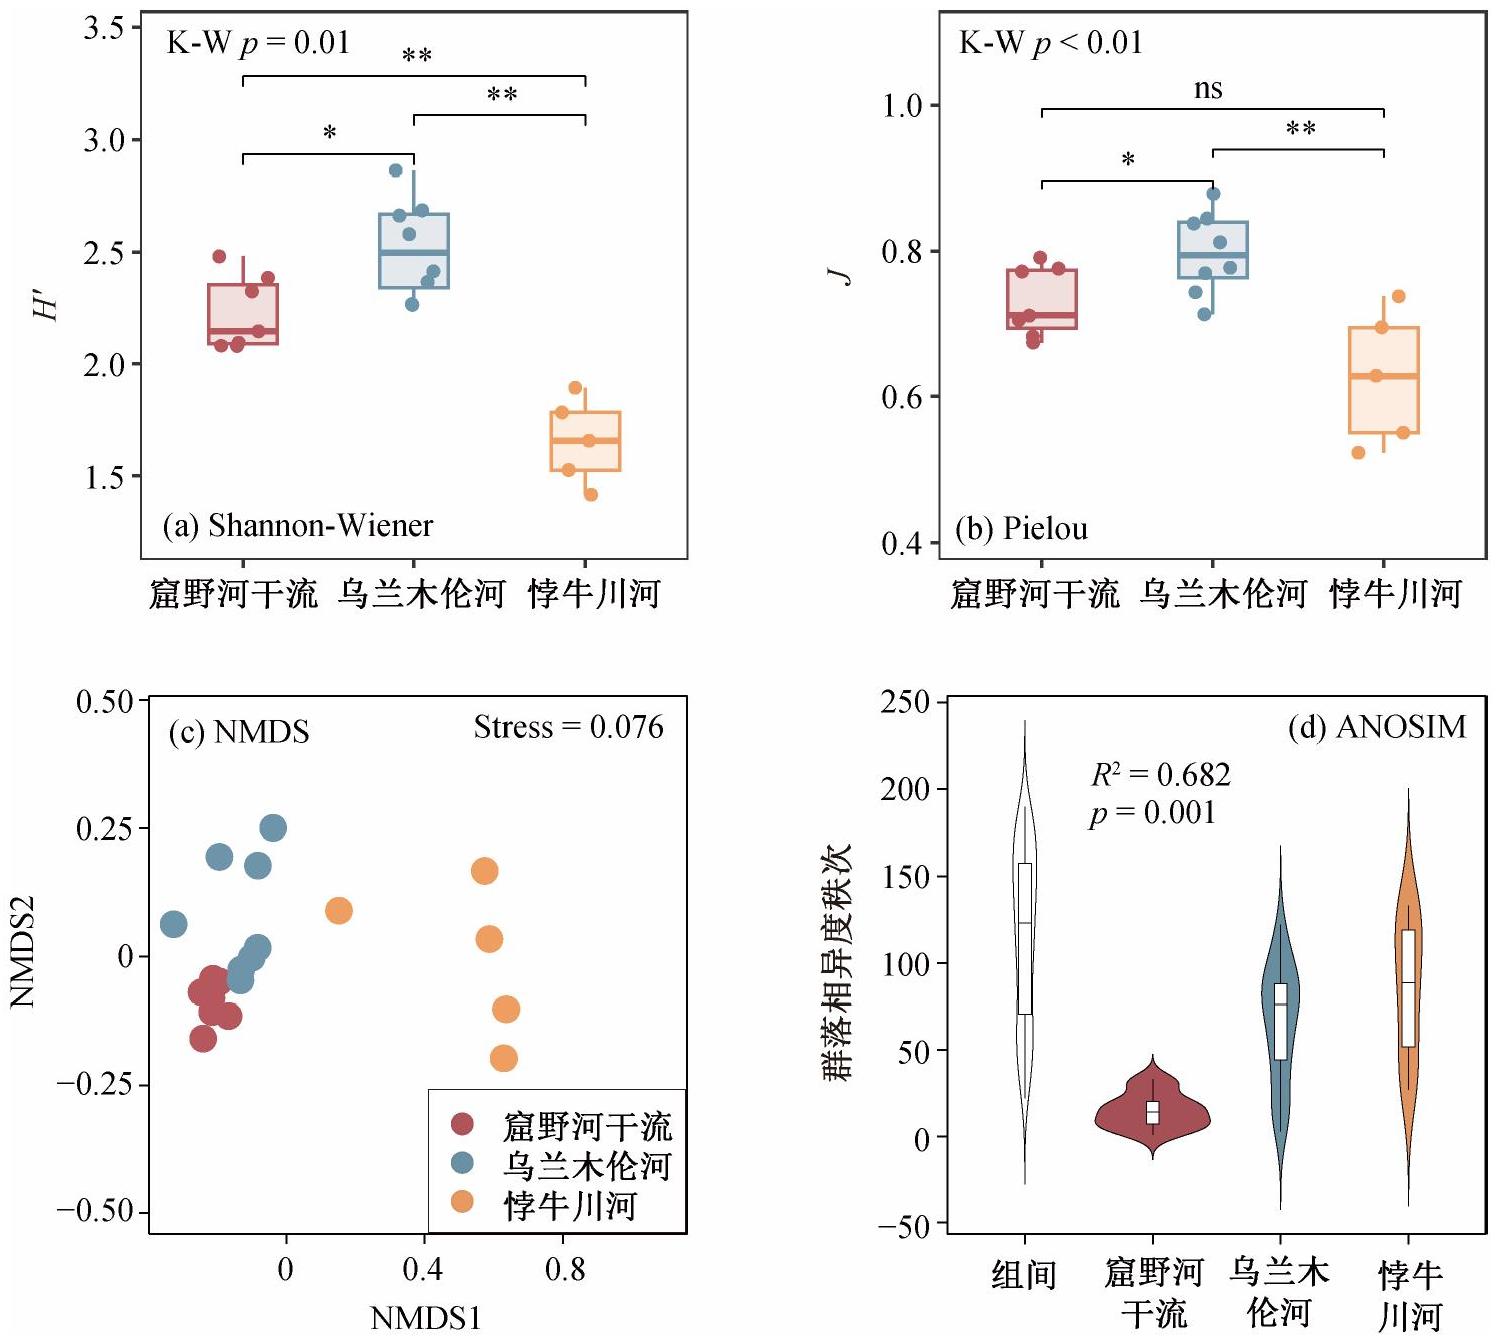
图4 窟野河流域浮游植物的 alpha 和 beta 多样性
Fig.4 Alpha and beta diversity of phytoplankton in the Kuye River basin
窟野河干流、乌兰木伦河和悖牛川河 3 条河段的 WQI 平均值分别为 47.06, 48.02 和 52.77 (图5 (a))。乌兰木伦河的水质整体上较差; 窟野河干流下游水质表现出一定的波动性, 介于中等与较差等级之间; 相比之下, 悖牛川河上游的水质较为健康,处于中等水平, 其下游水质则降至较差水平。此外,螺旋纤维藻和针形纤维藻密度与 WQI 显著负相关(图5(b)和(c))。水质改善时, 这两种藻类密度降低;水质变差时, 密度升高。因此, 螺旋纤维藻和针形纤维藻的密度数值能够反映水质状况, 可以作为窟野河流域水质的潜在指示物种。但是, 由于本研究为单次采样, 存在一定的局限性, 后续工作中将考虑进行更深入的分析来验证其指示作用。
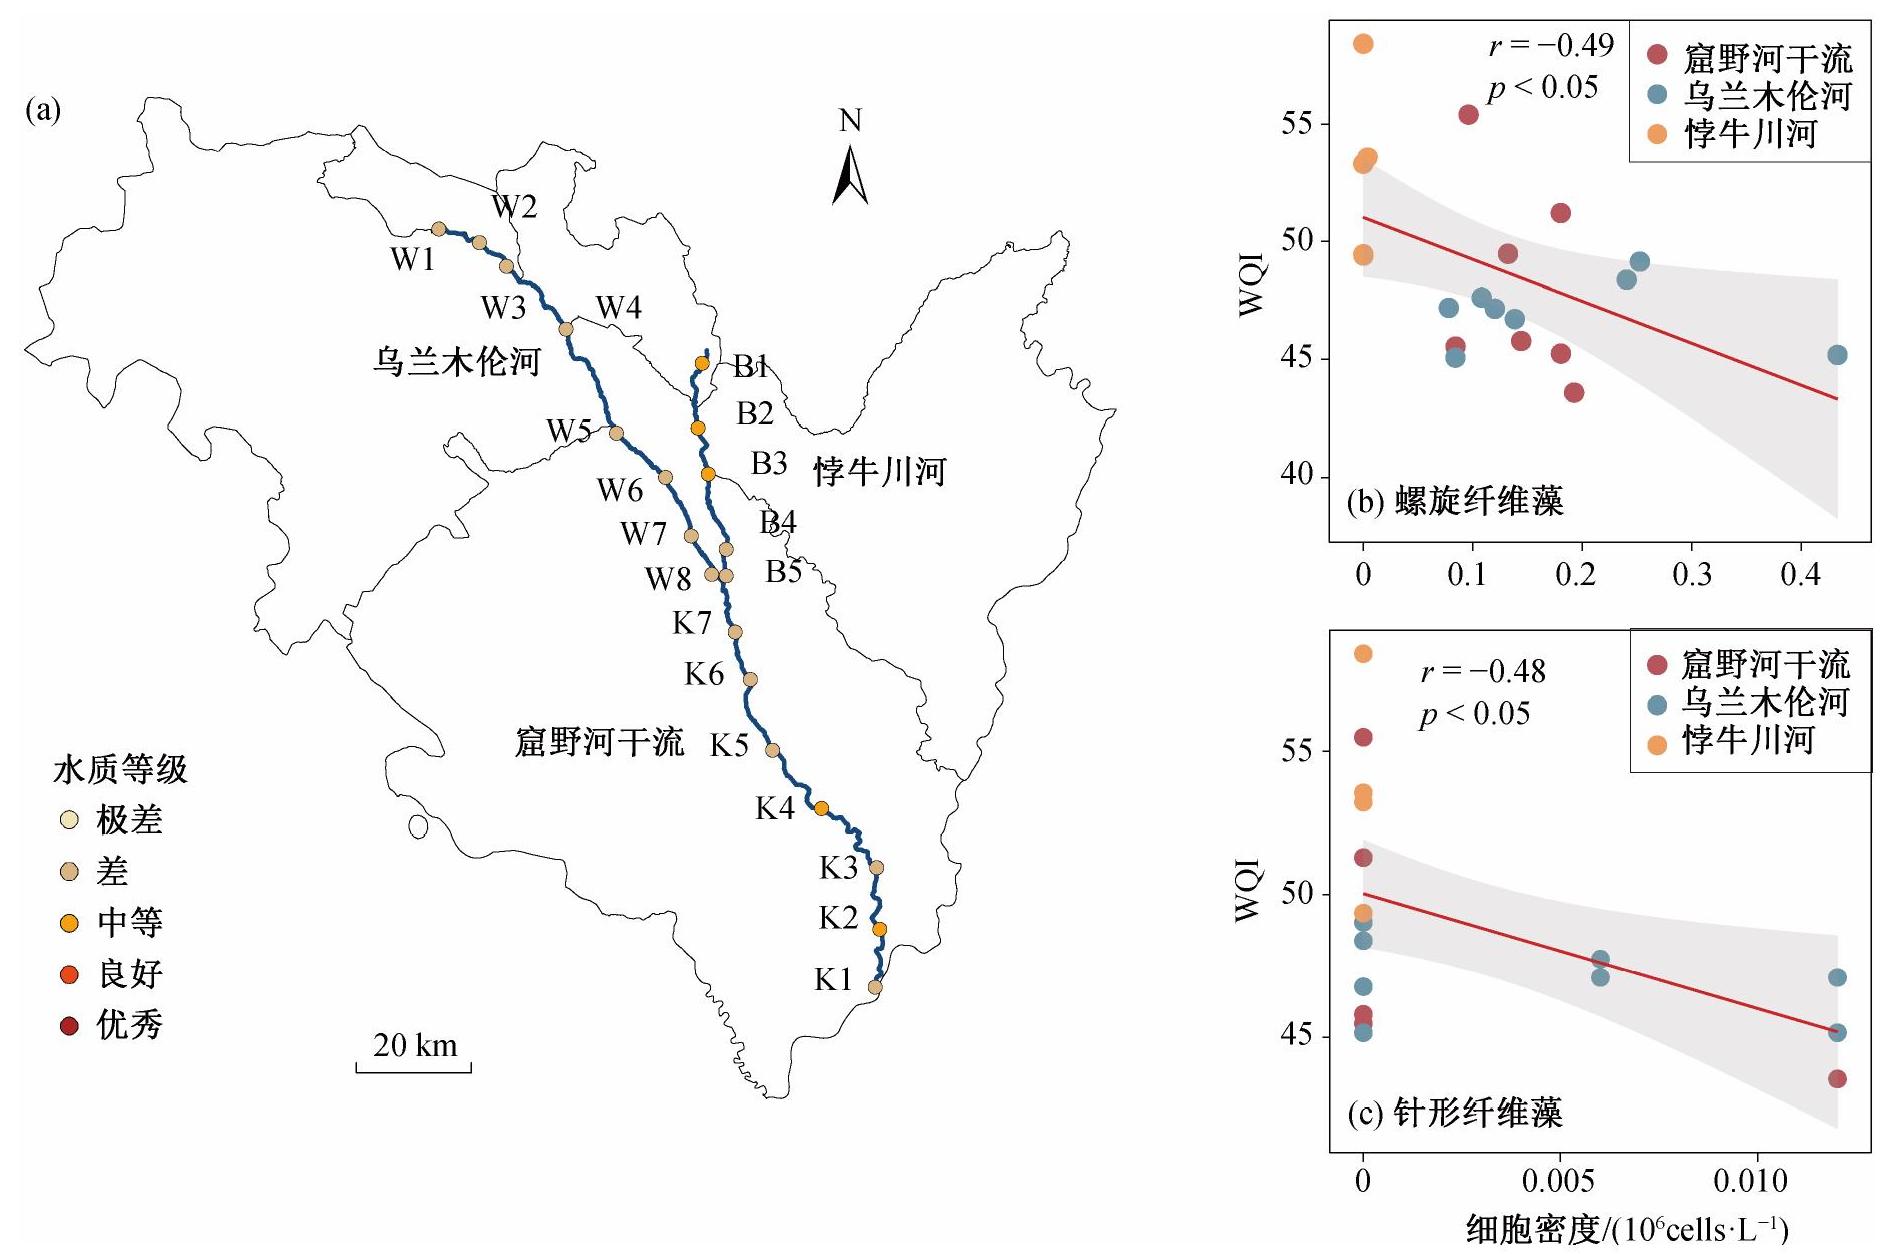
图5 窟野河流域水体 WQI 评价结果
Fig.5 Evaluation results of WQI of water in the Kuye River basin
使用 RDA 分析方法, 探究影响窟野河流域浮游植物群落的关键环境因子。从图6(a)可以看出, 窟野河流域浮游植物的群落结构受到环境因子的显著影响(Pseudo-F= 2.2065, p < 0.001), 模型解释了约40.78%的变异, 浮游植物的群落结构受 COND, WT, DOC 和 pH 值的显著影响。值得注意的是, 窟野河干流主要受 pH 值影响, 乌兰木伦河主要受 WT 和DOC 影响, 悖牛川河则主要受 COND 影响。窟野河水体中温度、溶解有机碳和 pH 值在 3 个河段存在显著性差异, 这些因素共同影响浮游植物的组成和分布。WT 影响浮游植物的呼吸作用和光合作用, 较高的 WT 会加速细胞代谢速率并促进藻类生 长[33]。pH 值通过影响营养物质的吸收和 DOC 的利用[28]来调节浮游植物生长。浮游植物还可以利用DOC 来降低对光合固碳的依赖, 以便适应高含沙河流环境。此外, 与其他旱区多沙河流类似, 窟野河拥有较高的电导率[26], COND 反映水体中各种离子的总浓度和总含量, 通过调控细胞生长代谢过程来影响浮游植物的多样性和群落结构[34]。
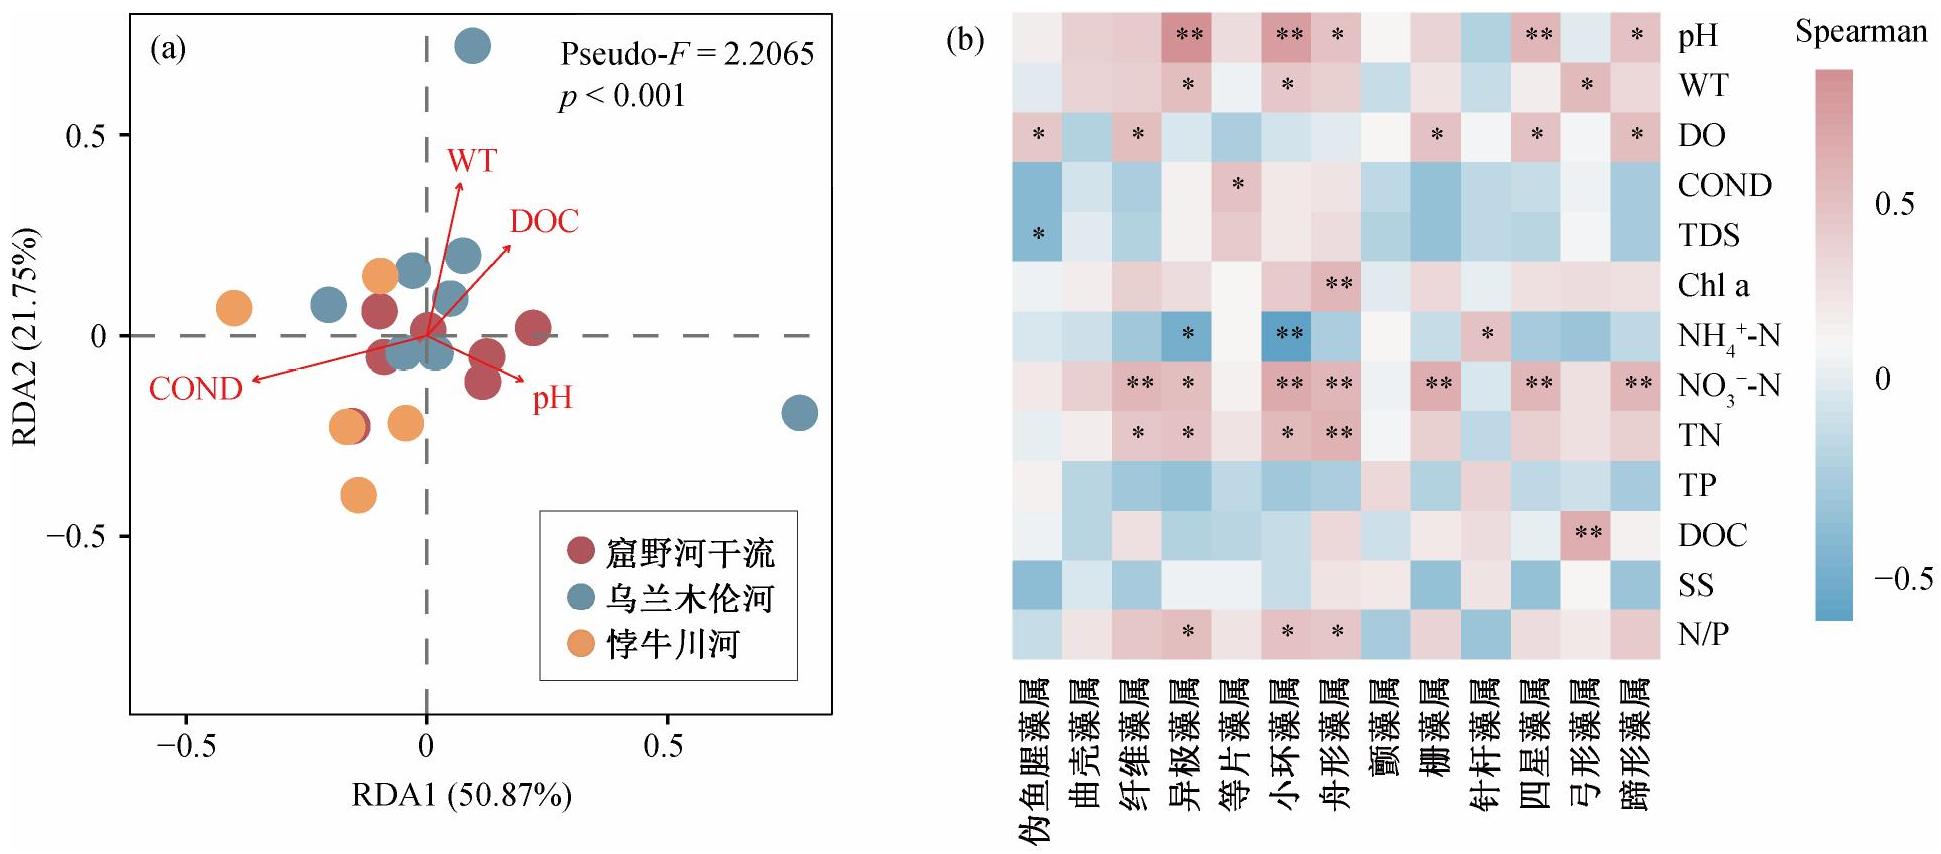
图6 窟野河流域浮游植物与环境因子的冗余分析(a)和相关性分析(b)结果
Fig.6 Redundancy analysis (a) and Spearman correlation analysis (b) between phytoplankton and environmental factors in the Kuye River basin
进一步考察窟野河浮游植物优势属与理化因子的相关性, 结果如图6(b)所示。栅藻属在窟野河干流中占优势, 与 DO 和 NO3--N 显著正相关。小环藻属和异极藻属是乌兰木伦河的主要优势属, 与 WT,NO3--N, TN 和 N/P 显著正相关, 与 NH4+-N 显著负相关。作为主要氮源, NO3--N 与较多优势属显著相关, 是影响浮游植物群落结构的关键因子[35]。N/P是衡量水环境营养平衡和生态健康状况的重要指标, 均远大于 Redfield 比(16:1), 与异极藻和小环藻(乌兰木伦河的优势藻)正相关, 可能促进了其生长代谢[36]。等片藻属是悖牛川河的典型优势物种, 与COND 显著正相关, 表明较高的 COND 有利于其生长[37]。蓝藻门中的伪鱼腥藻属是 3 条河段的共有优势属, 与 DO 显著正相关, 与 TDS 显著负相关, 可能由于较高的溶解氧加快细胞呼吸速率[38], 而较高的溶解固体抑制藻细胞的光合作用和生长[39]。
1) 窟野河流域共鉴定出浮游植物 6 门 41 属 60种, 窟野河干流和乌兰木伦河为绿藻-硅藻型, 悖牛 川河为硅藻-蓝藻型。
2) 窟野河流域水质整体上处于中等到较差水平, 其中, 悖牛川河在 3 条河段中水质最好。螺旋纤维藻和针形纤维藻可以作为评估窟野河流域水质的指示物种。
3) 窟野河流域 3 条河段的 pH, WT, NH4+-N, NO3--N 和 DOC 呈现显著的差异, COND, WT, DOC以及 pH 值是塑造窟野河流域浮游植物群落的关键 因素。
4) DO 和 NO3--N 是影响干流优势栅藻的重要环境因子。在乌兰木伦河中, NO3--N, NH4+-N 和 N/P是决定小环藻属和异极藻属成为主要优势类群的关键因素; 在悖牛川河中, COND 则是影响等片藻属优势地位的重要环境因子。
5) 本文揭示了窟野河不同河段的优势浮游植物及其关键驱动因素, 为针对性地开展生态监测、污染治理、生态修复以及优化水资源配置等河流健康管理工作提供了直接且具体的实践依据。
[1] 孙然好, 魏琳沅, 张海萍, 等. 河流生态系统健康研究现状与展望——基于文献计量研究. 生态学报,2020, 40(10): 3526-3536
[2] 刘强, 尉飞鸿, 夏雪, 等. 1980—2020 年窟野河流域土地利用景观格局演变及其驱动力. 水土保持研究,2023, 30(5): 335-341
[3] 余国安, 李志威, 黄河清, 等. 人类活动影响下的干旱区河流地貌演变——以塔里木河为例. 水科学进展, 2017, 28(2): 183-192
[4] Padedda B M, Sechi N, Lai G G, et al. Consequences of eutrophication in the management of water resources in Mediterranean reservoirs: a case study of Lake Cedrino (Sardinia, Italy). Global Ecology and Conservation, 2017, 12: 21-35
[5] Xia R, Wang G, Zhang Y, et al. River algal blooms are well predicted by antecedent environmental conditions.Water Research, 2020, 185: 116221
[6] Conynl, Ferrer N C Cáceres E J, et al. Dynamics of the phytoplankton community of an Argentine Pampean wetland in relation to water environmental variables.Hidrobiológica, 2017, 27(1): 93-102
[7] Richardson J, Miller C, Maberly S C, et al. Effects of multiple stressors on cyanobacteria abundance vary with lake type. Global Change Biology, 2018, 24(11):5044-5055
[8] 方丽娟, 刘德富, 杨正健, 等. 水温对浮游植物群落结构的影响实验研究. 环境科学与技术, 2014, 37(增刊2): 45-50
[9] 龚川, 贡丹丹, 刘德富, 等. 不同光照强度下香溪河浮游植物演替过程研究. 环境科学研究, 2020, 33 (5): 1214-1224
[10] 苏发文, 高鹏程, 来琦芳, 等. 铜绿微囊藻和小球藻对水环境pH的影响. 中国水产科学, 2016, 23(6):1380-1388
[11] 王钰, 李小妹, 冯起, 等. 窟野河流域河岸沙丘地貌格局及变化. 中国沙漠, 2019, 39(1): 52-61
[12] 申恋绵, 蒋晓辉, 雷宇昕. 窟野河流域河川基流变化及其驱动因素分析. 水资源研究, 2020, 9(4): 373-385
[13] 鲍振鑫, 张建云, 王国庆, 等. 基于水文模型与机器学习集合模拟的水沙变异归因定量识别——以黄河中游窟野河流域为例. 水科学进展, 2021, 32(4):485-496
[14] Orihel D M, Schindler D W, Ballard N C, et al. The “nutrient pump: ” Iron-poor sediments fuel low nitrogen-to-phosphorus ratios and cyanobacterial blooms in polymictic lakes. Limnology and Oceanography, 2015,60(3): 856-871
[15] 徐沙, 郭嘉伟, 胡恩, 等. 汉江上游平水期浮游植物群落特征及水质生物评价. 水生态学杂志, 2024,45(3): 148-155
[16] 魏印心, 胡鸿钧. 中国淡水藻类: 系统、生态及分类. 北京: 科学出版社, 2006
[17] 翁建中. 中国常见淡水浮游藻类图谱. 上海: 上海科学技术出版社, 2010
[18] Shannon C E. A mathematical theory of communication. The Bell System Technical Journal, 1948, 27(3):379-423
[19] Pielou E C. Species-diversity and pattern-diversity in the study of ecological succession. Journal of Theoretical Biology, 1966, 10(2): 370-383
[20] Mcnaughton S J. Relationships among functional properties of Californian Grassland. Nature, 1967, 216:168-169
[21] 国家环境保护总局. 水和废水监测分析方法(第四版). 北京: 中国环境科学出版社, 2002
[22] 金相灿, 屠清瑛. 湖泊富营养化调查规范(第二版).北京: 中国环境科学出版社, 1990
[23] 王欣远, 潘保柱, 王立新, 等. 内蒙古典型湖泊水环境特征及水质评价. 环境科学, 2023, 44(12):6744-6753
[24] Ding Y, Pan B, Zhao G, et al. Geo-climatic factors weaken the effectiveness of phytoplankton diversity as a water quality indicator in a large sediment-laden river. Science of The Total Environment, 2021, 792:148346
[25] Ter Braak C J F, Šmilauer P. CANOCO reference manual and CanoDraw for Windows user’s guide:software for canonical community ordination (version 4.5). Ithaca, NY: Microcomputer Power, 2002
[26] 卢悦, 胡恩, 丁一桐, 等. 西北地区延河流域浮游植物群落结构特征及影响因素. 应用生态学报,2023, 34(6): 1669-1679
[27] 张鑫, 潘保柱, 韩谞, 等. 泾河流域多沙河流浮游植物群落变化特征及驱动因子. 环境科学, 2025, 46(6): 3382-3392
[28] 郭善嵩, 胡恩, 丁一桐, 等. 土地利用影响下无定河流域浮游植物群落与环境因子响应. 环境科学,2024, 45(4): 2211-2222
[29] 马煜, 陆欣鑫, 范亚文. 松花江哈尔滨段浮游植物群落格局及其与环境因子的相关性. 生态学报,2021, 41(1): 224-234
[30] 王超, 李新辉, 赖子尼, 等. 珠三角河网水域栅藻的时空分布特征. 生态学报, 2014, 34(7): 1800-1811
[31] 张静, 胡愈炘, 胡圣, 等. 长江流域浮游植物群落的环境驱动及生态评价. 环境科学, 2023, 44(4):2072-2082
[32] 庞一鸣, 陈淑华, 徐杭州, 等. 伪鱼腥藻(Pseudanabaena sp.)及其产生2-甲基异莰醇(2-MIB)的研究进展. 生态学杂志, 2021, 40(5): 1530-1548
[33] 赵巧华, 孙国栋, 王健健, 等. 水温、光能对春季太湖藻类生长的耦合影响. 湖泊科学, 2018, 30(2):385-393
[34] Stefanidou N, Katsiapi M, Genitsaris S, et al. Patterns in alpha and beta phytoplankton diversity along a conductivity gradient in coastal Mediterranean lagoons.Diversity, 2020, 12(1): 38
[35] 叶琳琳, 吴晓东, 刘波, 等. 太湖西北湖区浮游植物和无机、有机氮的时空分布特征. 湖泊科学,2017, 29(4): 859-869
[36] Wang W L, Moore J K, Martiny A C, et al. Convergent estimates of marine nitrogen fixation. Nature, 2019,566: 205-211
[37] Stenger-Kovács C, Körmendi K, Lengyel E, et al. Expanding the trait-based concept of benthic diatoms:development of trait- and species-based indices for conductivity as the master variable of ecological status in continental saline lakes. Ecological Indicators,2018, 95: 63-74
[38] 俞焰, 刘德富, 杨正健, 等. 千岛湖溶解氧与浮游植物垂向分层特征及其影响因素. 环境科学, 2017,38(4): 1393-1402
[39] Mccall S J, Hale M S, Smith J T, et al. Impacts of phosphorus concentration and light intensity on river periphyton biomass and community structure. Hydrobiologia, 2017, 792(1): 315-330